Cómo la vida fluye
Recuerdo mi etapa de estudiante de Medicina, en particular, al acceder al estudio de la embriología, la ciencia que estudia el desarrollo de un embrión precursor de un ser vivo. Saqué muy buena nota en la materia porque la estudié a fondo. Me maravillaba el pensar cómo, desde un conglomerado celular, se originaba toda una bioingeniería de especialización de células para formar órganos y tejidos, para la construcción de un ser vivo. Qué mecanismos utiliza la naturaleza para decirle a cada célula que se diferencie en un tipo dado (piel, músculo, neurona…) y además lo haga en un sitio y un momento apropiado para la construcción de un eje fetal.
Cada fase de su desarrollo es bien conocida y no por ello deja de causar verdadero asombro la construcción de órganos y sistemas del ser en construcción. Al llegar a la embriología del corazón y sus vasos, la fascinación fue en aumento. La célula miocárdica (cardiocito) es una fibra de músculo estriado, muy parecida a las células que forman nuestros músculos esqueléticos. Éstos se agarran o se insertan en estructuras duras sobre las que ejercer la contracción, con ella el movimiento corporal. En cambio, en la construcción del corazón no hay puntos de agarre. Solo la evolución desde un tubo cardiaco primitivo a procesos de torsión sobre sí mismo, junto a desplazamientos y septaciones bien orquestadas para conectar y separar las 4 cavidades y su conexión con venas y arterias. Es decir, la torsión de las paredes musculares crea cavidades que luego se tabican y conectan. Todo un sinfín de procesos inteligentes para generar una bomba aspirante e impelente que con su continua contracción-relajación nos mantiene alerta toda la vida. Es absolutamente claro el grado de conexión inter-celular en la sincronía de cómo el corazón se contrae y se relaja en cada latido para mantener el flujo sanguíneo. No puede haber una confluencia celular mayor.
Me sigue también fascinando la elegancia, la inteligencia y la generosidad del comportamiento del corazón como un todo orgánico ante las distintas situaciones y adversidades. Demuestra que piensa, aprende y se adapta siempre. Sí, también esos comportamientos fisiopatológicos me siguen fascinando. El corazón es un modelo de cooperación celular, ciudadanía y pertenencia. Su embriología, su formación y su función son todo un espectáculo ante nuestros ojos.
Pero al asistir a este tipo de espectáculos, los científicos siguen diseñando estudios para responder a la pregunta de cómo la naturaleza forma ese camino desde el cigoto al desarrollo de un nuevo ser. De qué mecanismos se vale y cómo ordena a cada célula cuándo, dónde y cómo se han de diferenciar en un determinado tejido. La bioingeniería que lo realiza es un ejemplo de que la naturaleza sigue intuitivamente los caminos evolutivos y los reproduce cuando tienen éxito, en este caso en la formación material de un nuevo ser multicelular. Todas sus células con un mismo genoma pero con diferente función.
A mediados del siglo XX los amplios conocimientos sobre embriología se juntaron con los avances en genética. Desde el principio de esa conexión todos los científicos daban por hecho que los genes estarían siempre marcando los pasos de lo que los embriólogos observaban en la progresiva transformación fetal. En principio, una simple secuenciación de los transcriptores de un solo gen pudieran ser analizados experimentalmente como un espacio matemático multidimensional. Es decir, miles de dimensiones para representar miles de genes con todas sus capacidades, lo que es imposible de visualizar. Solo era canalizable un estado matemático bidimensional, como mucho, de difícil manejo por lo que los modelos experimentales no mostraban hasta ahora mucha claridad. Las células conllevan cambios de estado que sí son generados por genes, resulta difícil analizar cuáles están activos o qué proteína generan en cada proceso de cambio. Un solo gen puede influir en activar en “on” o en “off” otros genes en la misma célula, lo que amplia aún más las posibilidades. Combinando experimentos con la teoría, solo un pequeño número de genes clave llevarían a cada célula a tomar decisiones de destino. Los modelos matemáticos no lograban dar con la tecla.
Sin embargo, también se tenía la idea de que el desarrollo embrionario no solo puede estar basado en una mera lectura de un programa genético sino que parece ser un proceso dinámico, también sujeto a situaciones físicas en el cuál las comunidades de células se construyen a sí mismas con mutuos estados de negociación e interacción, para actuar al unísono. De manera que la construcción de un ser se asemejaba a un proceso dinámico como el fluir de un río en descenso y, si así fuera, el torrente estaría siendo dividido una y otra vez por montículos, obstáculos, lagunas y valles que el paisaje por el que transcurre conforma. Si el fluir fuera un posible método, habría que hablar claramente de que los medios físicos también pudieran contribuir. La simple gravedad existente es la que hace fluir el torrente enfrentándole al paisaje y sus montículos, que dividen los flujos y orientan destinos.
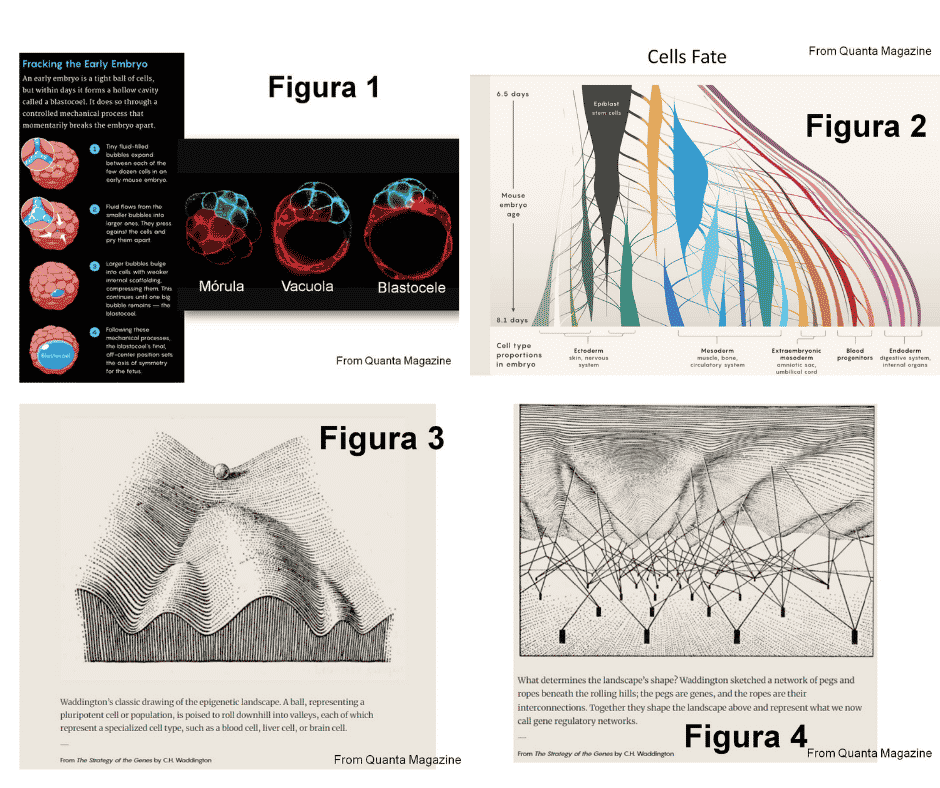
De hecho, hay otro hecho físico muy notorio en una fase muy inicial del desarrollo. Del conglomerado inicial de células pluri-potenciales (estado de Mórula) comienza a aparecer un exudado extracelular como pequeños ríos intercelulares que confluyen en pequeños lagos que se van juntando y agrandando, lo que ejerce una presión física sobre las células circundantes a la vacuola en progresión que cada vez presiona más a las células. Al final, una sola gran vacuola presiona y ocupa el centro rodeada por las células que ha apartado físicamente, alcanzándose un nuevo estado llamado Blastocele (Figura 1). Se crea una cavidad por métodos físicos, por el empuje del líquido extracelular. A partir de este estado, se forma el eje fetal y se orientan las simetrías. Las células empujadas se ordenan en 3 capas rodeando al cele. El endodermo, el mesodermo y el ectodermo. De este último saldrá el sistema nervioso y la piel. Del mesodermo el músculo, el esqueleto y el sistema circulatorio y del endodermo los progenitores sanguíneos, el sistema digestivo y los órganos internos. También se forma un mesodermo extraembrionario que formará el saco amniótico y el cordón umbilical (Figura 2). El destino de todo ello ya está organizado pues en 3 capas formadas por células pluri-potenciales aún no diferenciadas. Esta cartografía inicial ayuda algo al intentar comprender cómo células idénticas en el embrión temprano son capaces por posición y fluidez de dividirse y desarrollarse hacia los distintos tipos de células y tejidos que forman organismos complejos, como el nuestro.
En los años 50, Conrad Hal Waddington (Wad), un prestigioso biólogo inglés pensaba que, aun aceptando el papel indiscutible de los genes, no le quedaba claro cómo ellos establecen las formas y las características de los organismos, cómo generan los distintos tejidos y órganos en sus sitios adecuados y en el momento oportuno durante el desarrollo embrionario. Wad visualizaba un paisaje con colinas y valles con terreno en descenso por el que transcurría un rio cuyas aguas repletas de células iban siendo separadas por los obstáculos naturales. Las bifurcaciones separaban células idénticas a diferentes destinos de diferenciación (piel, músculo, neuronas, hematíes…) destinos que ya no podían evitar, al ser canalizadas. Lo cierto es que una vez canalizadas todas sobreviven y se orientan, ninguna se pierde o retrocede. Cuando el conglomerado de células alcanzaba un punto de bifurcación en su camino, era la gravedad la que las empujaba hacia un sitio u otro (Figura 3). En términos científicos, les empujaba a su diferenciación, su destino celular. Cada riachuelo lleva consigo células que, una vez canalizadas, se orientan a un reducido número de estados evolutivos bien definidos.
Pero, ¿qué determina la topografía de colinas y valles que conforman el paisaje por el que circulan las células?. En su libro “The strategy of genes”, Waddington dibuja un paisaje desde el subsuelo, donde se organiza el empuje o la depresión del terreno en superficie para adecuar los cauces. Es justo ahí donde según Wad actúan los genes, con ganchos y cuerdas que deforman el terreno. Un subsuelo genéticamente diseñado para un transcurrir adecuado del flujo en superficie, por el que circulan las células del embrión (Figura 4).
Ante el carácter casi “mágico” de la visión de Wad su teoría fue en parte ignorada por la comunidad científica y tachada de mera metáfora y es que es así, realmente una metáfora pero muy certera. Lo cierto es que con el paso del tiempo, todos los hallazgos se amoldan a la perfección con la visión de Wad. Un proceso en curso que fluye. Las posibilidades toman forma en el paisaje. Además, las células que navegan y confluyen se juntan, se conectan con mutua negociación e interacción y se suman al destino, canalizándose así su función. Los cambios celulares marcan una trayectoria cronológica que las lleva a un limitado número de estados finales. Cuando la diferenciación toma cuerpo, ya no hay vuelta atrás. Sin embargo, parece ser que la expresión génica de los cambios celulares no se rige por el tiempo ya que no hay sincronía en las transformaciones celulares.
En definitiva, la formación de seres pluricelulares parece un proceso que fluye en un paraje genéticamente diseñado para desvíos y confluencias por acción de la gravedad y otros medios físicos que acontecen en el embrión. La vida entera de ese ser, ya nacido, será también un fluir idéntico al de su formación. Simplemente, la vida fluye.